持续性神经炎症是脊髓损伤(SCI)后功能障碍的核心驱动因素,而小胶质细胞脂质代谢重编程(尤其是脂滴异常堆积)与慢性炎症密切相关。中山大学附属第三医院刘斌教授团队发表研究,整合单细胞转录组学、空间转录组学与精细行为学评估,发现 SCI 后小胶质细胞中 PLIN2 选择性上调,并通过与线粒体外膜蛋白 PGAM5 互作促进脂滴-线粒体接触,将脂肪酸从线粒体逆向转运至脂滴,抑制β-氧化并诱导线粒体功能障碍,进而激活 cGAS-STING 炎症通路。行为学层面,研究采用 Basso Mouse Scale(BMS)评分、BehaviorAtlas 3D-AI 小鼠运动功能分析系统及肌电图(EMG),系统评估了 Plin2 敲除及 PLIN2 220-392 结构域缺失突变对 SCI 后运动功能恢复的影响,发现 PLIN2 缺失可显著改善后肢步态参数(踝/膝关节活动度、足趾/踝高度)及神经电生理传导。
一湾生命科技 BehaviorAtlas AI 小鼠运动功能分析系统 为本研究步态与运动学分析提供关键技术支撑!
脊髓损伤(SCI)后,持续性神经炎症是阻碍神经功能恢复的核心病理环节,而小胶质细胞作为中枢神经系统常驻免疫细胞,其代谢重编程——尤其是脂滴(lipid droplet)的异常堆积——已被证实与衰老和神经退行性疾病中的促炎状态密切相关(LDAM 亚群)。然而,脂滴如何驱动炎症信号,以及能否通过干预脂滴-细胞器互作来促进 SCI 后运动康复,此前尚无明确答案。
2026 年 7 月 24 日,中山大学附属第三医院刘斌教授团队在 Cell Death & Differentiation 发表研究论文,首次揭示了 PLIN2-PGAM5 调控的脂滴-线粒体接触通过脂肪酸代谢重编程驱动 SCI 后小胶质细胞神经炎症的完整机制,并利用 BehaviorAtlas AI 小鼠运动功能分析系统精细化地评估了 PLIN2 缺陷及结构域突变对 SCI 后小鼠后肢运动功能恢复的促进作用。
01
脊髓损伤后,小胶质细胞中出现了什么样的“脂质危机”?
脊髓损伤(SCI)后,持续性神经炎症是导致神经元丢失和功能障碍的核心因素。大量研究表明,脂质代谢紊乱与神经炎症密切相关。然而,SCI 后脂质究竟在何种细胞中异常累积、如何驱动炎症,此前尚不清楚。
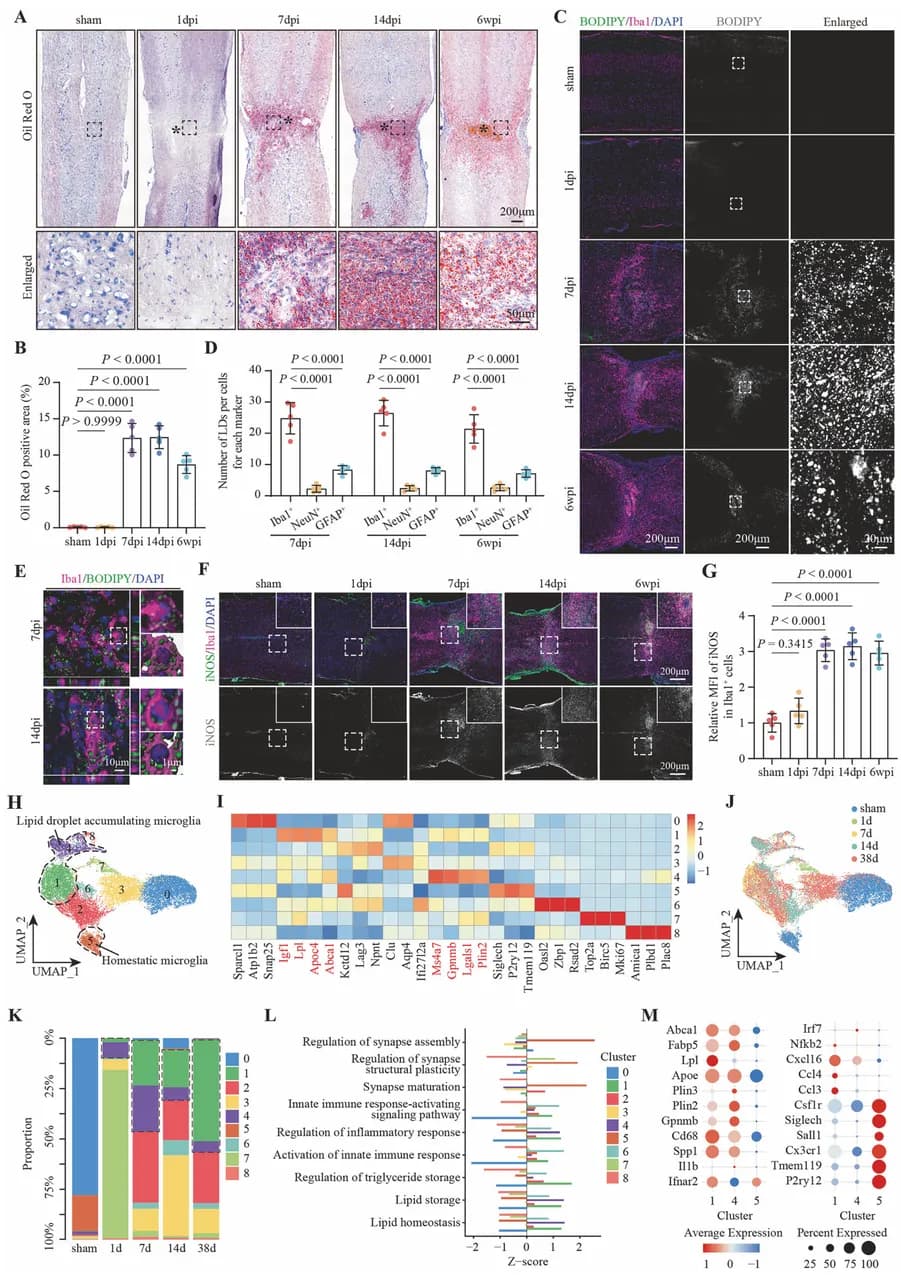
研究团队首先利用空间转录组和 Oil Red O 染色发现,SCI 后损伤核心区域的脂质累积从急性期(7 天)持续至慢性期(6 周)。进一步通过免疫荧光共定位证实,这些脂滴主要累积在小胶质细胞(Iba1⁺)中,而非神经元或星形胶质细胞。
为了深入探究小胶质细胞的异质性,团队分析了 SCI 的单细胞测序数据,鉴定出 9 个小胶质细胞亚群。其中,cluster 1 和 4 在 SCI 后显著扩增,富集脂质代谢和炎症通路,高表达 Plin2,与先前报道的脂滴累积小胶质细胞(LDAM)特征高度一致。
体外实验进一步证实了因果关系:使用脂滴抑制剂(Triacsin C、Atorvastatin)处理 BV2 小胶质细胞后,脂滴累积减少,iNOS 和炎症因子(IFN-β、IL-1β)表达显著下降。这说明脂滴累积是炎症的驱动因素,而非伴随现象。
这一发现首次在脊髓损伤中系统鉴定了 LDAM 亚群,揭示了脂滴累积与小胶质细胞炎症之间的直接关联。
02
PLIN2:LDAM 中特异性上调的关键“脂滴守护者”
脂滴表面覆盖着一类 PLIN 家族蛋白(PLIN1-PLIN5),它们负责维持脂滴结构稳定并调控脂质代谢。那么,SCI 后究竟是哪个 PLIN 成员在发挥作用?
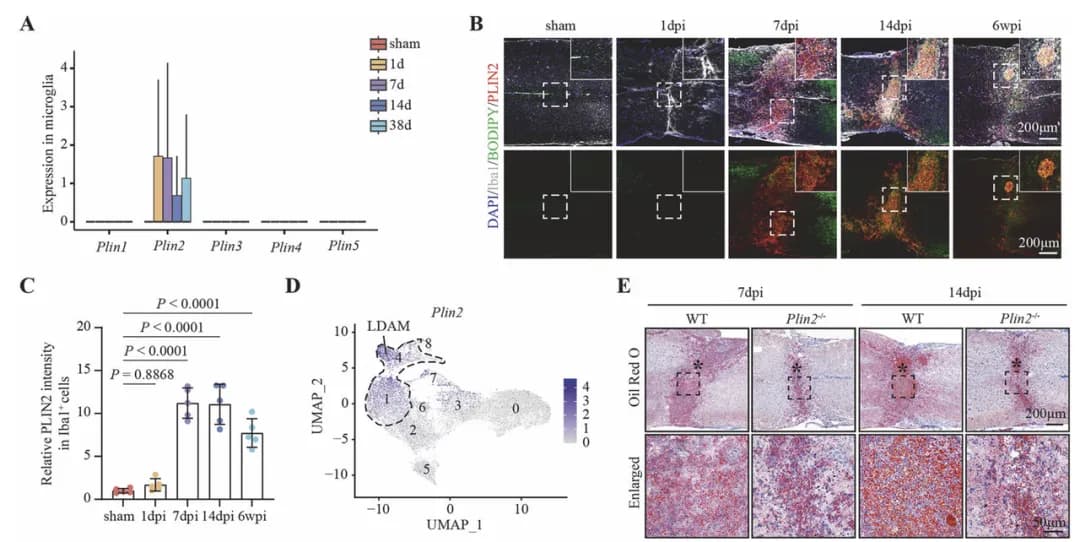
研究团队分析单细胞测序数据后发现,在 PLIN 家族中,仅 PLIN2 在 SCI 后的小胶质细胞中显著上调,而 PLIN1、PLIN3、PLIN4 和 PLIN5 几乎不表达。这一结果在空间转录组和 bulk RNA-seq 数据中得到了验证。
PLIN2 蛋白水平在损伤后 7 天、14 天和 6 周均持续升高,且其表达高度集中于 LDAM 亚群(cluster 1 和 4)。这表明 PLIN2 是 LDAM 的一个特异性分子标志物,可能在脂滴累积和炎症调控中发挥关键作用。
03
PLIN2 缺失:从脂滴减少到功能恢复的“连锁反应”
为了验证 PLIN2 的功能,研究团队构建了 Plin2 基因敲除(Plin2⁻/⁻)小鼠。
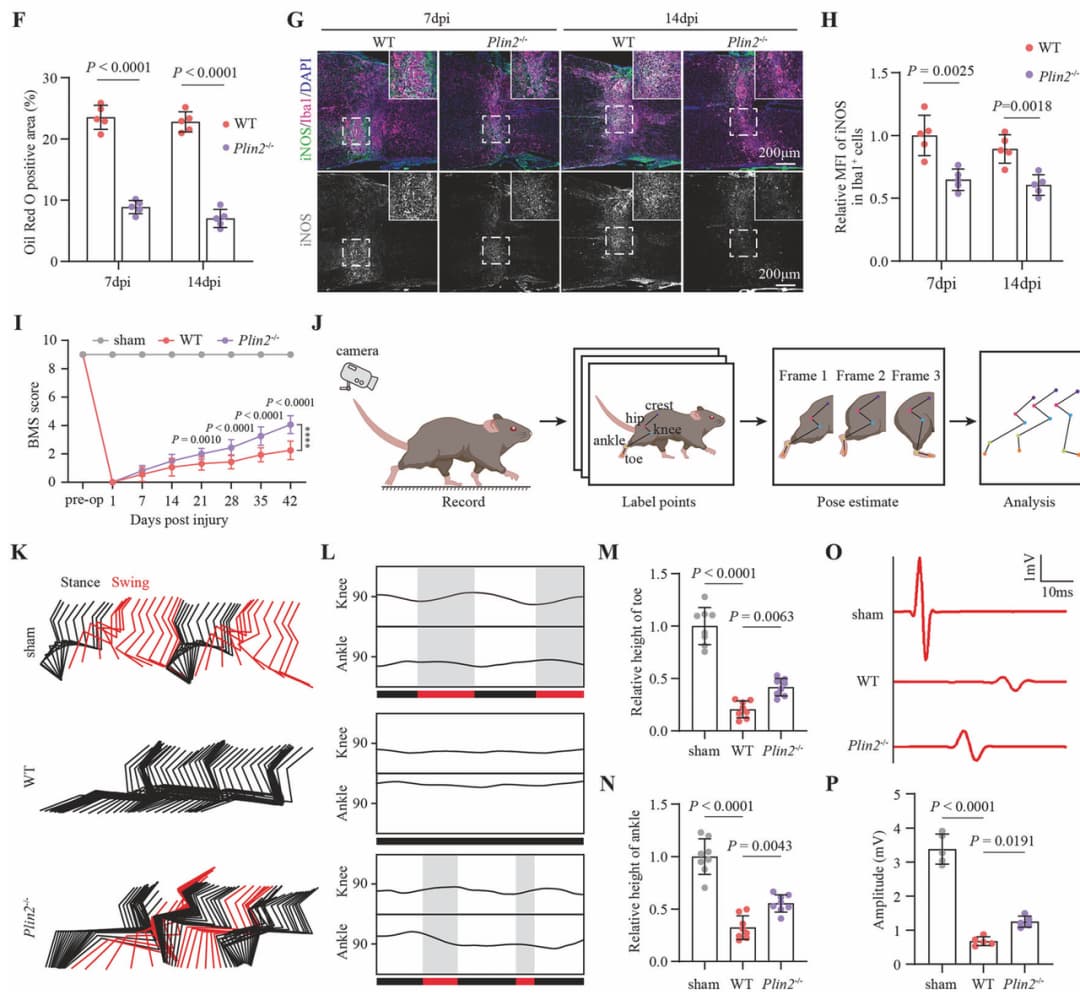
在细胞和分子层面,Plin2 KO 小鼠的脂滴累积显著减少,iNOS 和促炎因子(IFN-β、IL-1β)表达下降,神经元丢失明显减轻。
在行为学层面,研究团队采用了多层次、定量化的评估体系:
- BMS 评分(开 field 运动评估): Plin2⁻/⁻ 小鼠的 BMS 评分显著提高,表明后肢运动功能恢复更好;
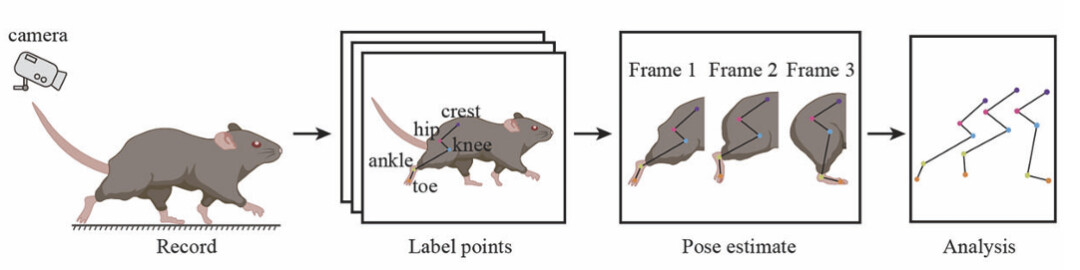
- 运动学步态分析(BehaviorAtlas AI 小鼠运动功能分析系统): Plin2⁻/⁻ 小鼠的踝关节和膝关节活动度增加,趾高和踝高显著提升,步态更加协调;
- EMG(运动诱发电位): Plin2⁻/⁻ 小鼠的腓肠肌 MEP 幅值增加、潜伏期缩短,表明神经传导功能改善。
这些结果说明,PLIN2 缺失能够同时减轻病理损伤和促进功能恢复,证实 PLIN2 是 SCI 后神经炎症的一个关键驱动因子。
04
PLIN2 是如何“点燃”炎症的:STING 通路的发现
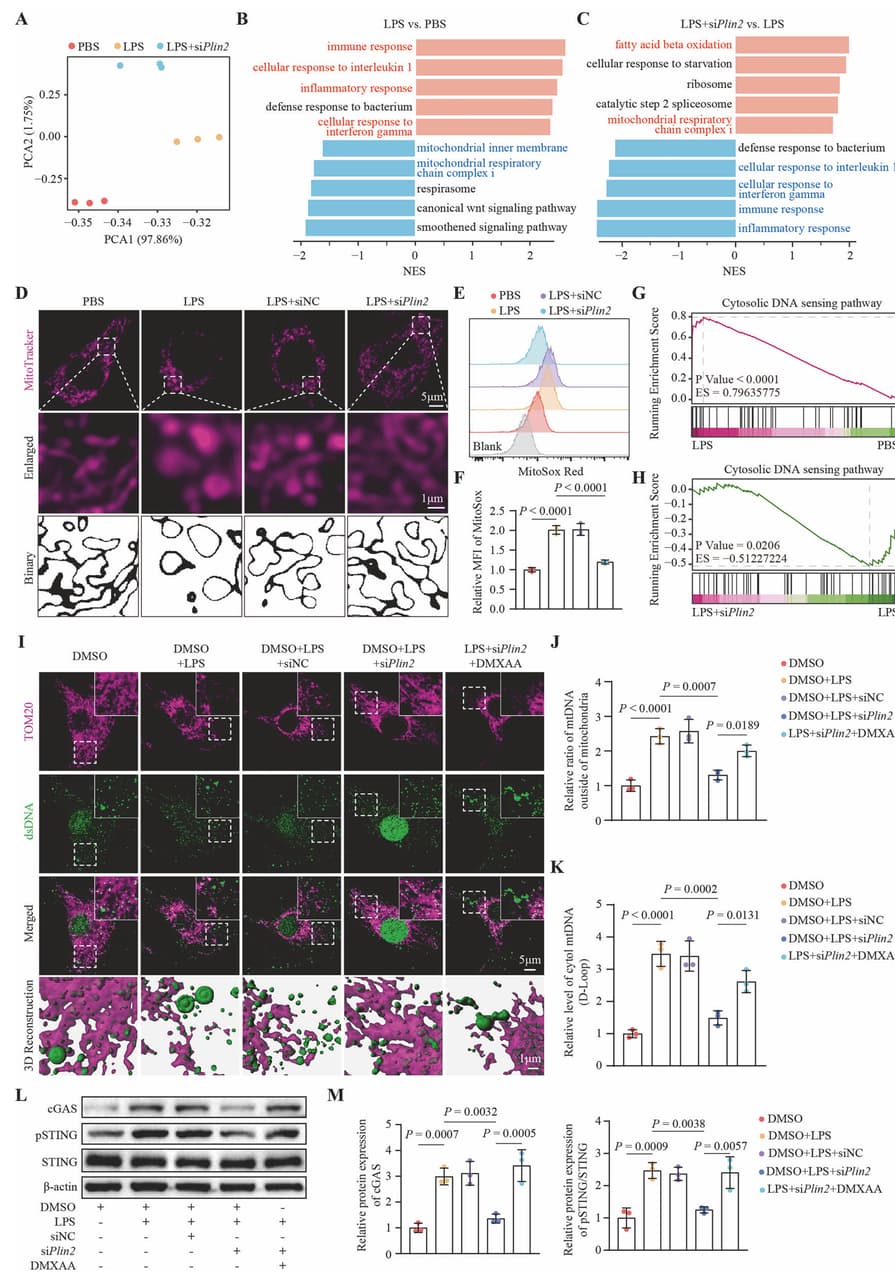
PLIN2 究竟通过什么分子机制驱动炎症?研究团队对 PLIN2 敲低的 BV2 细胞进行了转录组测序。
GSEA 分析显示,LPS 刺激显著激活了炎症通路并损害线粒体功能,而 PLIN2 敲低则产生相反的效果。具体表现为:
- 线粒体网络更加完整,fragmentation 减少;
- 线粒体膜电位(JC-1 红/绿比值)升高;
- 线粒体 ROS(MitoSOX)显著降低。
鉴于线粒体功能障碍可触发先天免疫信号,团队进一步聚焦于 cGAS-STING 通路。GSEA 显示 PLIN2 敲低显著抑制了 STING 相关信号通路。机制上,PLIN2 敲低减少了胞浆 mtDNA 释放(TOM20/dsDNA 共定位和 D-Loop qPCR 验证),而 STING 激动剂 DMXAA 可逆转这一效应,重新激活炎症。
关键验证实验:使用 STING 抑制剂 H-151 处理后,PLIN2 敲低不再产生额外的抗炎效果,证明 PLIN2 的作用完全依赖于 STING 通路。
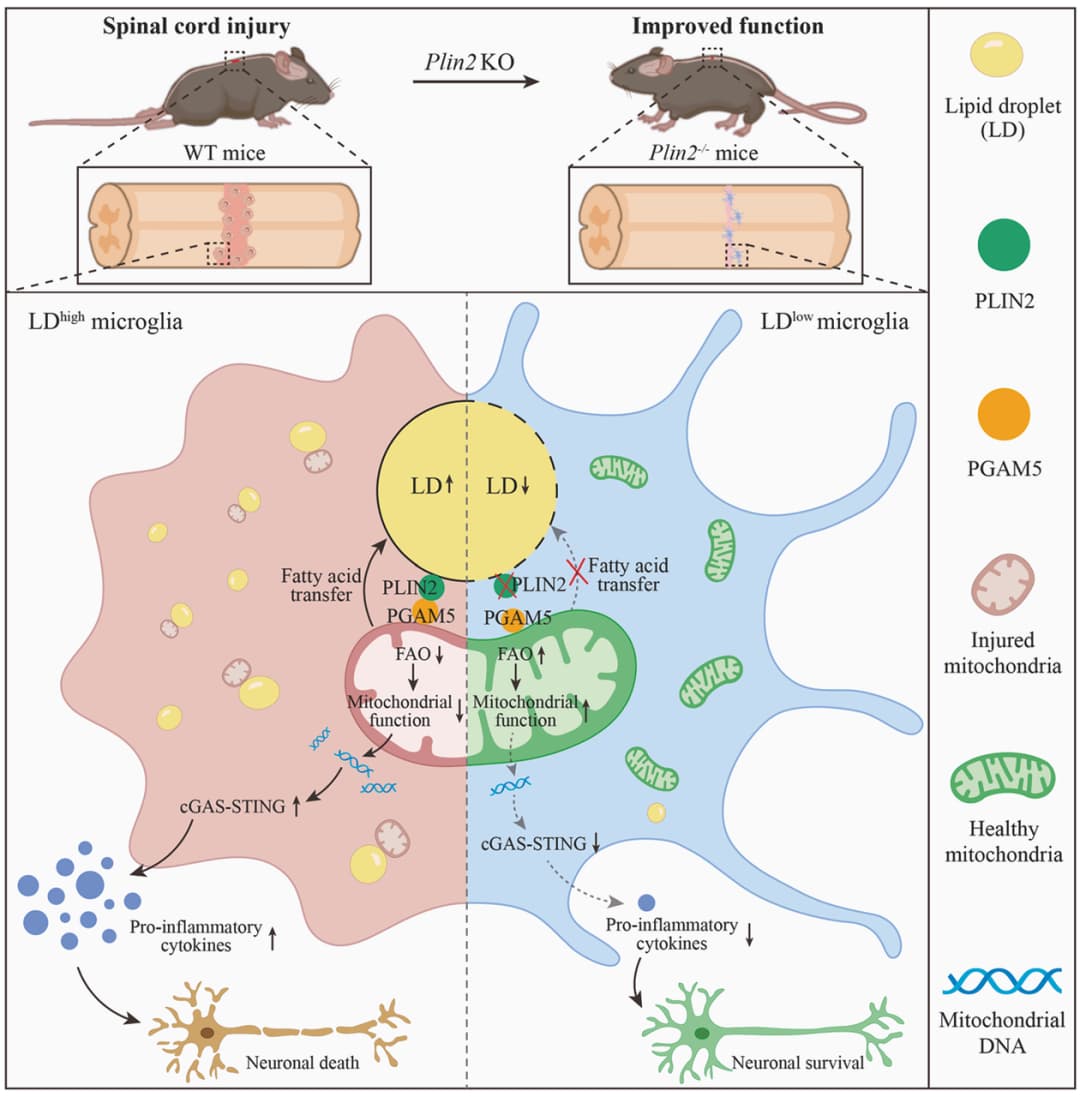
这一发现揭示了 PLIN2 驱动炎症的核心分子通路:PLIN2 → 线粒体功能障碍 → mtDNA 释放 → cGAS-STING 激活 → 炎症因子产生。
05
PLIN2 作用线粒体的分子桥梁:GAM5 的发现
既然 PLIN2 定位在脂滴上,而 STING 激活源于线粒体功能障碍,那么 PLIN2 是如何“影响”线粒体的?
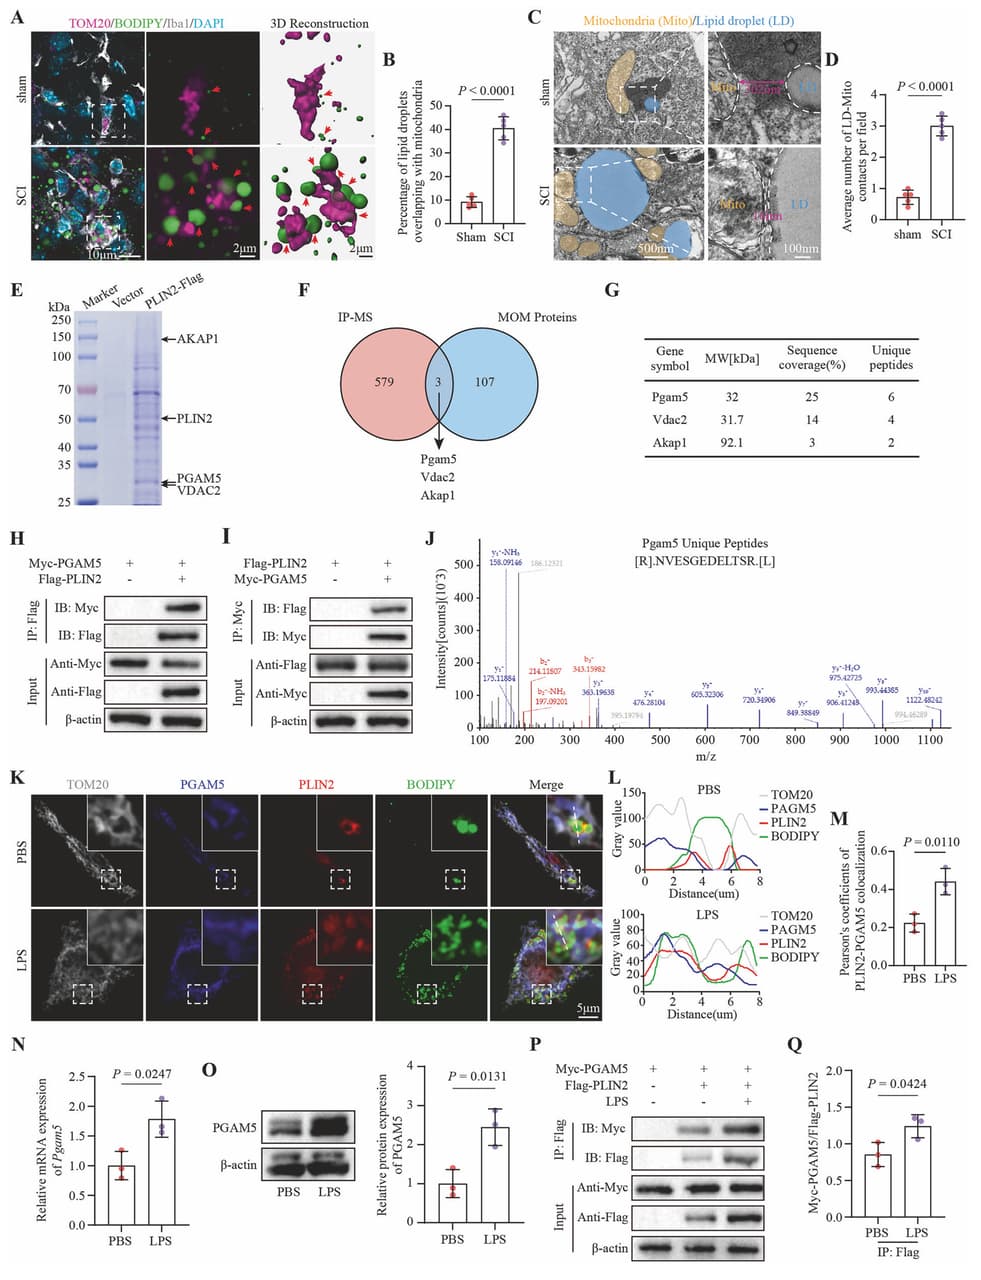
研究团队首先通过 BODIPY/TOM20 共染色和透射电镜(TEM)证实,SCI 后脂滴与线粒体之间的空间接触显著增加。
为了寻找连接脂滴和线粒体的“分子桥梁”,团队进行了免疫共沉淀-质谱(IP-MS)分析,并与线粒体外膜蛋白数据库(MitoCarta3.0)交叉比对,筛选出 PGAM5、VDAC2 和 AKAP1 三个候选分子。Co-IP 实验进一步验证,PGAM5 是 PLIN2 的主要互作蛋白。
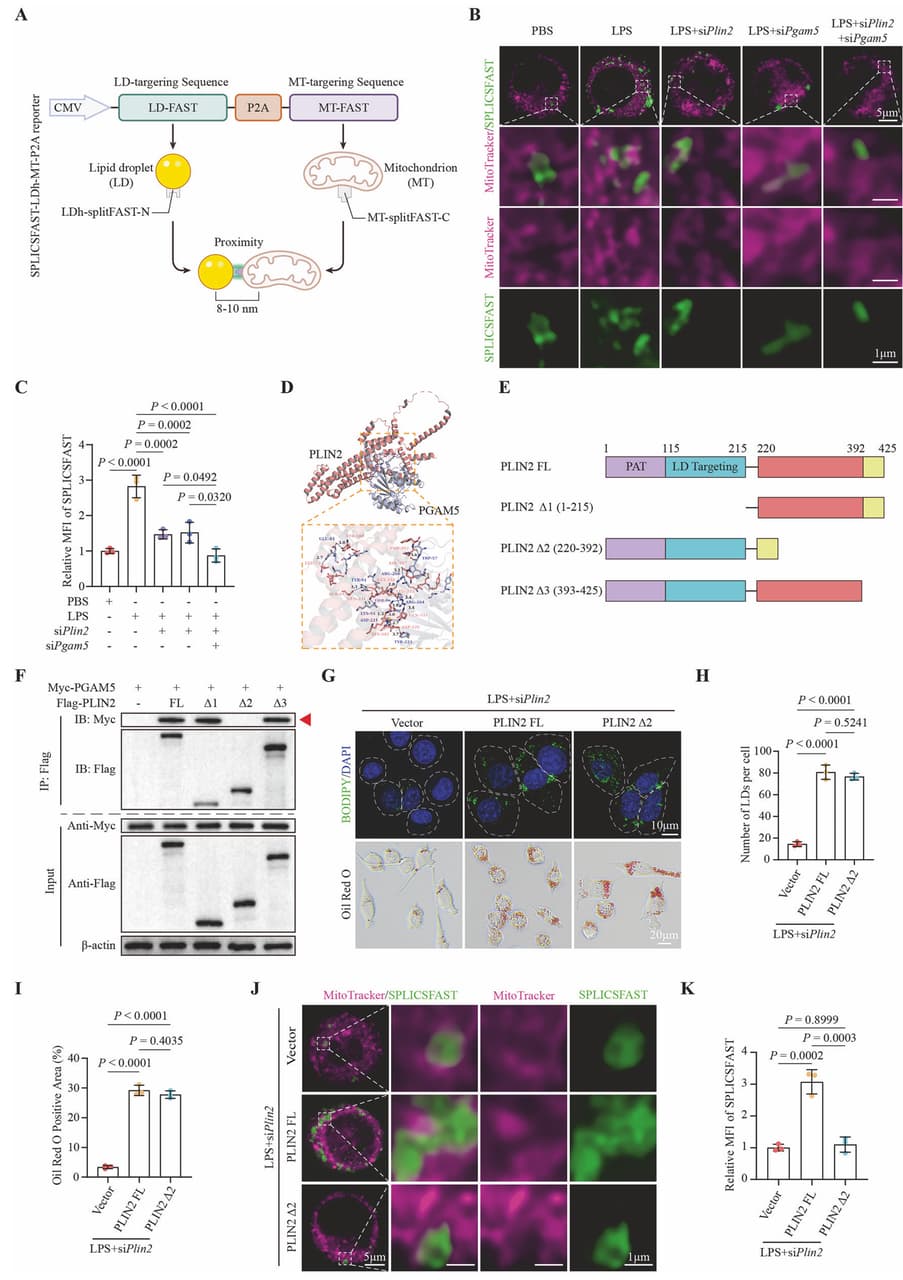
LPS 刺激可增强 PLIN2 与 PGAM5 的共定位和结合,并上调 PGAM5 表达。利用 SPLICSFast-LDh-MT-P2A 报告系统(一种只有当脂滴和线粒体距离在 8-10 nm 以内才会产生荧光的工具),团队证实 PLIN2 或 PGAM5 敲低均可显著减少脂滴-线粒体接触。
06
PLIN2 的“核心武器”:220-392 区域
PLIN2 蛋白包含多个功能域:PAT 结构域(1-115)、脂滴靶向结构域(116-215)、四螺旋束结构域(220-392)和疏水口袋(393-425)。
分子对接预测 220-392 区域是 PGAM5 结合的关键位点。团队构建了三个截短突变体(Δ1-215、Δ220-392、Δ393-425),Co-IP 证实仅 Δ220-392 突变体完全丧失 PGAM5 结合能力。
关键功能验证:
- Δ220-392 突变不影响脂滴累积(BODIPY 和 Oil Red O 染色证实);
- 但显著减少脂滴-线粒体接触(SPLICS 报告系统);
- 回补 Δ220-392 突变体可恢复线粒体膜电位、降低线粒体 ROS、抑制 STING 磷酸化和炎症因子表达。
这一发现精确定位了 PLIN2 的功能核心区域:220-392 区域是 PLIN2 发挥促炎功能的“开关”,而脂滴累积本身并不足以驱动炎症。
07
脂肪酸的“逆行”:从线粒体到脂滴的劫持
脂滴-线粒体接触通常介导脂肪酸从脂滴向线粒体转运,以支持β-氧化供能。那么,SCI 病理条件下这一流向发生了什么变化?
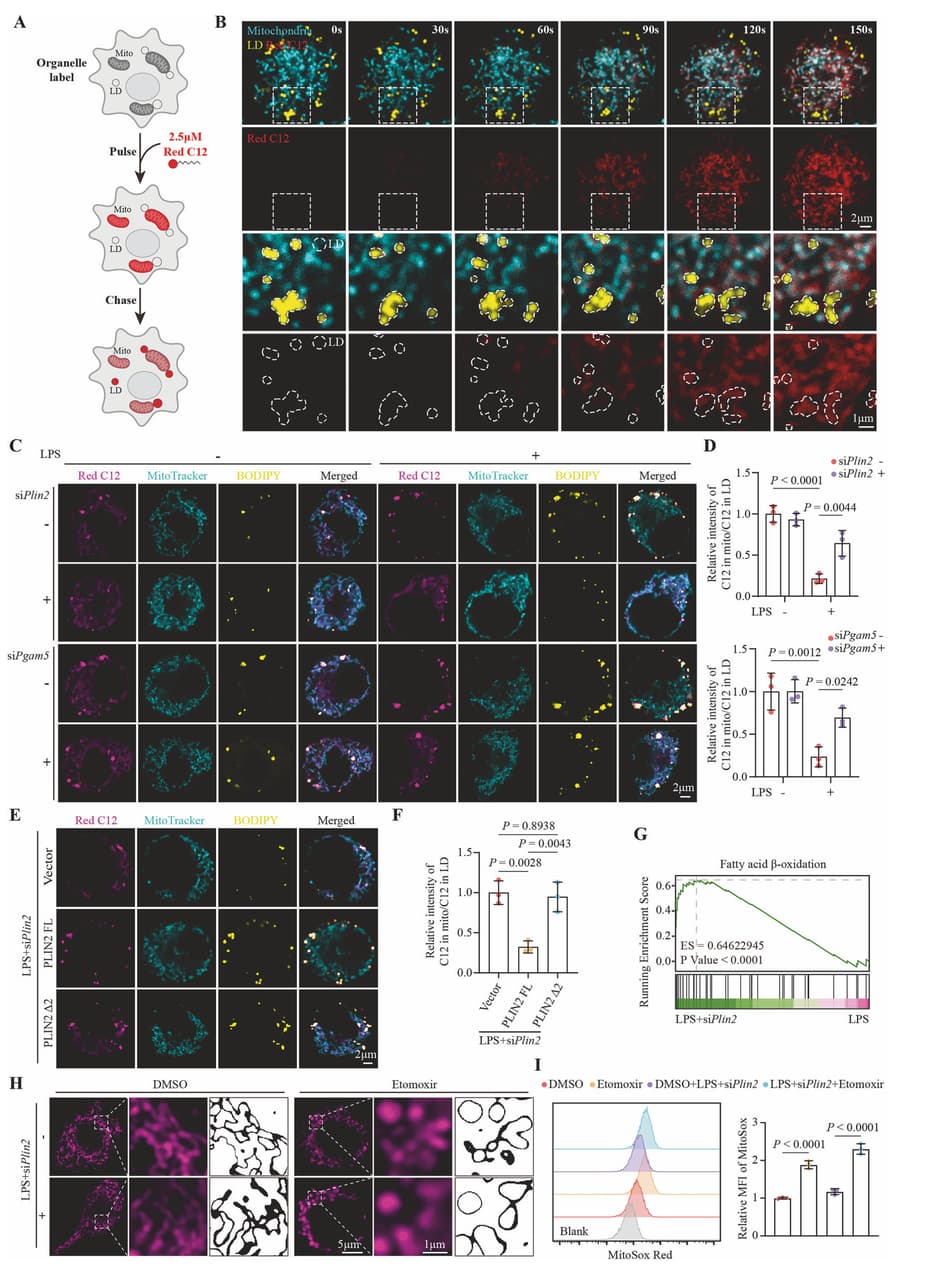
团队设计了脉冲追踪实验,利用荧光脂肪酸类似物 BODIPY 558/568 C12 追踪脂肪酸去向。惊人发现:LPS 刺激下,脂肪酸并非从脂滴流向线粒体,而是从线粒体被“劫持”回脂滴。PLIN2 或 PGAM5 敲低可逆转这一流向,使脂肪酸重新回到线粒体。
GSEA 和热图显示,LPS 处理抑制了β-氧化相关基因表达,而 PLIN2 敲低则重新激活β-氧化。
因果验证:使用β-氧化抑制剂 Etomoxir 处理后,PLIN2 敲低的线粒体保护效应、mtDNA 释放抑制和炎症抑制作用全部被阻断。这证明β-氧化的恢复是 PLIN2 敲低抗炎效应的核心下游事件。
08
一湾运动功能分析系统辅助验证 220-392 区域在体内的治疗价值
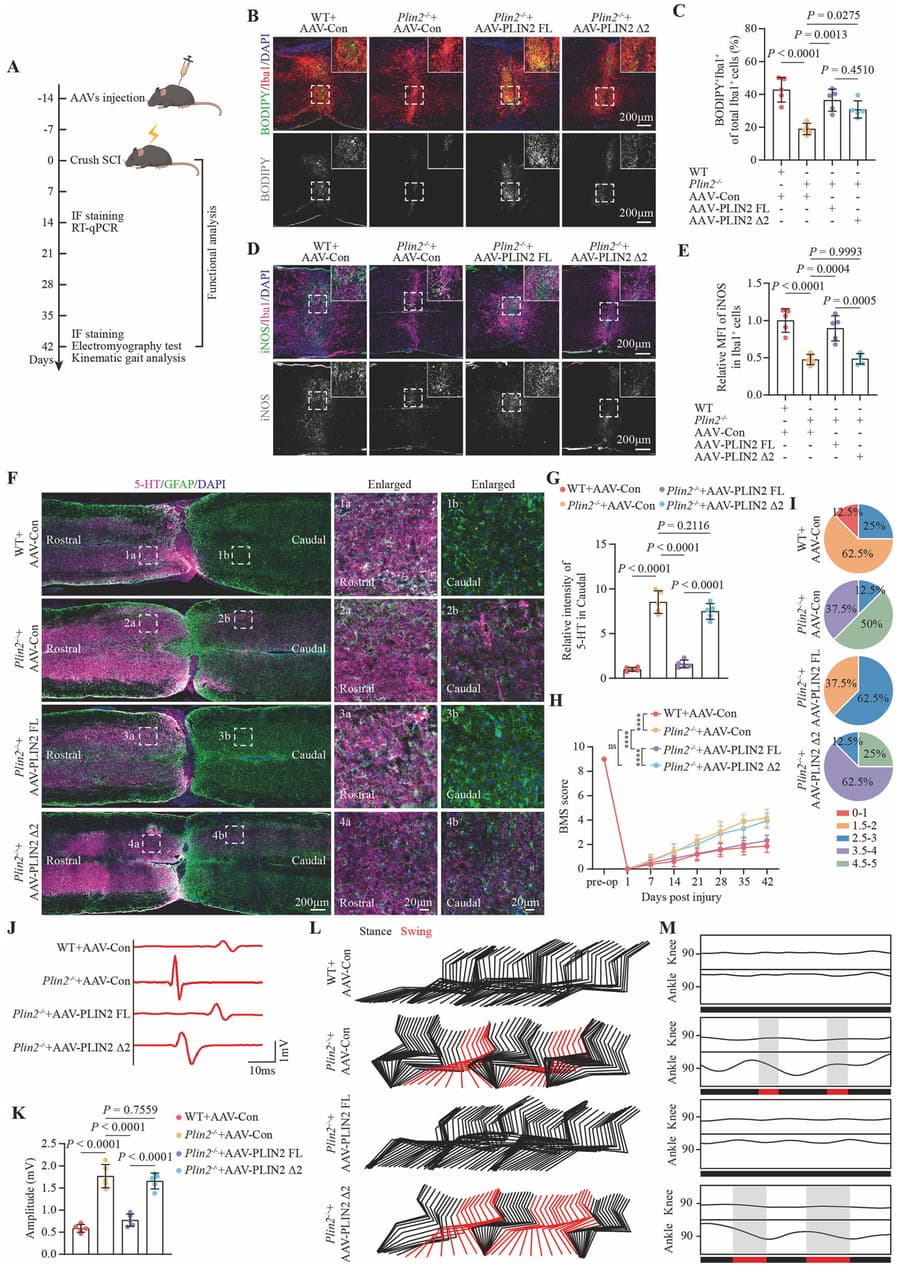
为了评估 220-392 区域的体内治疗潜力,团队在 Plin2⁻/⁻ 小鼠中通过 AAV 分别回补全长 PLIN2 或 Δ220-392 突变体。
结果令人振奋:
- Δ220-392 回补不影响脂滴累积,但显著降低 iNOS 和炎症因子表达;
- Δ220-392 回补组神经元存活增加、损伤面积减小、5-HT 阳性轴突增多;
- BMS 评分、EMG 和再次应用 BehaviorAtlas AI 小鼠运动功能分析系统分析均证实 Δ220-392 回补组功能恢复显著优于全长 PLIN2 回补组。
这些结果证明,破坏 PLIN2-PGAM5 互作(而非简单地减少脂滴)是更精准、更有效的治疗策略。
09
总结
本研究从单细胞转录组发现 LDAM 亚群入手,深入解析了 PLIN2-PGAM5-脂滴-线粒体接触-脂肪酸代谢重编程-STING 炎症的全链条机制,并通过 BMS 评分、运动学步态分析及 EMG 神经电生理三维行为学评估体系,严谨验证了 PLIN2 及其 220-392 结构域在 SCI 后运动功能恢复中的关键调控作用。该研究不仅为 SCI 慢性炎症提供了“代谢-免疫”交叉调控的新范式,还精准定位了 PLIN2-PGAM5 互作界面作为潜在药物靶点,为促进 SCI 患者神经康复开辟了新方向。
10
Bayone 助力科研
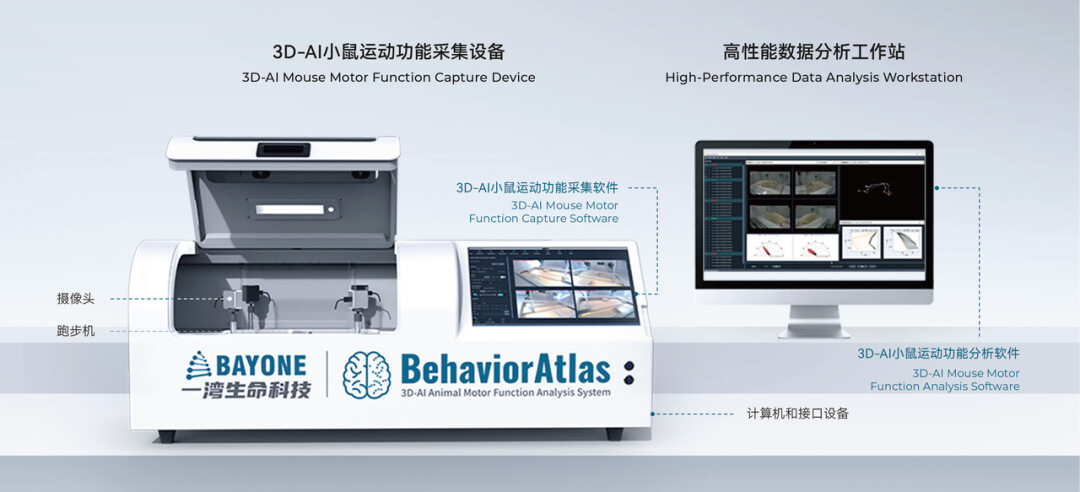
该研究论文在行为学运动功能分析中应用了一湾生命科技(BAYONE)自主研发的 BehaviorAtlas 3D-AI 小鼠运动功能分析系统,为脊髓损伤后运动功能修复的精细化评估提供了关键工具支撑。一湾生命科技致力于通过 AI 技术,为脑科学、脊髓损伤与神经修复等领域提供新一代更高效、更精准的仪器、软件、服务和标准。一湾生命科技专注于推动 AI 精细行为学技术在中枢神经系统损伤、神经退行性疾病、运动障碍模型的研究中发现新的生物标志物、表型鉴定及愈后评估等方面的应用。如果您对这一技术感兴趣,或者需要进一步了解如何通过专业步态分析软件,复现类似研究中的脊髓损伤运动功能评估范式,或针对特定步态、运动行为实验定制分析方案,欢迎了解更多关于 BehaviorAtlas 3D-AI 小鼠运动功能分析系统的信息!
目前,一湾生命科技的BehaviorAtlas 3D-AI 小鼠运动功能分析系统,已服务多位客户研究运动功能异常类疾病,重点在脊髓损伤类疾病研究。 在神经科学研究与脊髓损伤治疗的征程中,技术革新是推动我们前行的强劲动力。BehaviorAtlas 3D-AI 小鼠运动功能分析系统,突破传统 2D 步态分析的局限,从 3D 角度,为研究人员提供了全面且深入的多维运动功能+多维步态分析,可应用于疾病机制研究、药物筛选及疗效评估等方面。 如果您也想在科研道路上迈出关键一步,一湾生命的 3D-AI 小鼠运动功能分析系统将是您的得力助手,与您一同探索神经科学的奥秘,助力每一次重大发现。
如果您对 BehaviorAtlas 3D-AI 小鼠运动功能分析系统 感兴趣,欢迎通过公众号私信或扫描下方的微信二维码联系我们,我们将竭诚为您提供更多信息和帮助。
参考文献:
Huang D, Li H, Luo Y, et al. PLIN2-PGAM5-regulated lipid droplet-mitochondria contacts drive microglial neuroinflammation after spinal cord injury via fatty acid metabolic reprogramming. Cell Death Differ. Published online July 24, 2026. doi:10.1038/s41418-026-01815-5